Posttetanická potenciácia (PTP) je krátkodobé až prechodne dlhšie zvýšenie synaptickej transmisie a excitability nervového tkaniva, ktoré vzniká po predchádzajúcej opakovanej, spravidla krátkej a vysokofrekvenčnej stimulácii. Po približne sekundovej tetanizujúcej aktivácii môže byť odpoveď synapsie, najmä excitačný postsynaptický potenciál (EPSP), zvýšená niekoľko minút až hodín.
Potenciácia je dlhšie trvajúce zvýšené uvoľňovanie neuromediátora z aktivovanej synapsie, ktoré vzniká následne po jej opakovanej stimulácii. Tento jav má pomalší nástup, obvykle v priebehu sekúnd, a oveľa pomalšie doznievanie než facilitácia. PTP patrí medzi mechanizmy krátkodobej synaptickej plasticity a pravdepodobne sa podieľa na mechanizmoch učenia a formovania pamäťovej stopy.
Synapsa ako základ posttetanickej potenciácie
V našom mozgu sú vzájomne prepojené miliardy nervových buniek, teda neurónov, ktoré spolu komunikujú pomocou elektrických impulzov prenášaných za pomoci neurotransmiterov. Miesto, kde spolu nervové bunky komunikujú, sa označuje ako synapse.
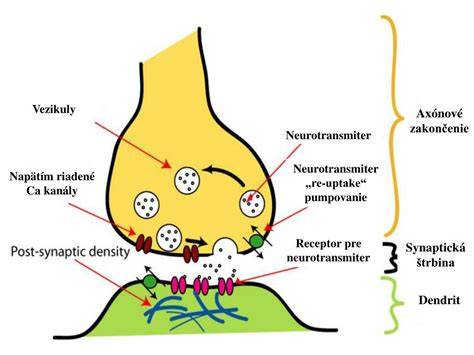
Každá synapse má presynaptickú membránu na konci nervovej bunky, ktorá odovzdáva signál, postsynaptickú membránu na bunke, ktorá signál prijíma, a synaptickú štrbinu medzi týmito membránami. Elektrický nervový impulz nie je schopný túto štrbinu jednoducho preskočiť, preto na prenos správy potrebuje neurotransmitery.
Neurotransmitery sú uložené v presynaptických nervových zakončeniach v malých vačkoch. Elektrický signál vyvolá ich uvoľnenie do synaptickej štrbiny, odkiaľ sa dostanú k susednej nervovej bunke a chemická informácia sa opäť premení na elektrický signál. Tento proces prebehne v priebehu niekoľkých milisekúnd.
Po prenose signálu sa neurotransmiter odbúra alebo sa navráti späť do výchozej nervovej bunky procesom spätného vychytávania, ktorý sa označuje aj ako reuptake. Medzi typické neurotransmitery patria serotonín, noradrenalín a dopamín; niektoré neurotransmitery, napríklad kyselina gama-aminomaslová (GABA), prenos signálu blokujú.
Elektrické a chemické synapsy
Elektrické synapsy sú založené na spojeniach typu gap junction. Prenos cez ne je rýchly, ale chýba mu výraznejšia plasticita. Chemické synapsy využívajú uvoľnenie neurotransmitera do synaptickej štrbiny a poskytujú priestor na moduláciu sily synaptického prenosu.
Typický neurón tvorí tisíce synapsií a v nervovom systéme sa nachádza približne 1014 synapsií. Samotný pojem synapsa pochádza z gréckych slov syn, teda spolu, a haptein, teda obejmout alebo stisknúť. Pojem synapsa zaviedol Charles Scott Sherrington a význam synaptických spojení v nervovej sústave zdôrazňovali aj Santiago Ramón y Cajal.
Morfologicko-funkčné usporiadanie neurónových spojení
Konvergencia
Konvergencia znamená, že viacero aferentácií sa zbieha na jeden neurón. Jeden postsynaptický neurón prijíma vstupy od mnohých presynaptických neurónov, čo umožňuje integráciu rôznych signálov do jedného výstupu.
Konvergencia je typická pre dráhy vedúce zo zmyslových orgánov, zostupné motorické dráhy alebo retikulárnu formáciu. Prívod vzruchu do jedného neurónu je pri nej mnohonásobný.
Divergencia
Divergencia znamená, že axón jedného neurónu sa vetví a privádza aferentáciu na väčší počet neurónov. Jeden neurón tak môže ovplyvniť širokú sieť ďalších buniek.
Divergencia umožňuje, aby jeden signál vyvolal podráždenie mnohých nasledujúcich neurónov. Príkladom je motoneurón predného rohu miechy, ktorý inervuje niekoľko buniek kostrového svalu a vytvára motorickú jednotku.
Sumácia synaptických potenciálov
Jednotlivý excitačný postsynaptický potenciál zvyčajne nestačí na vyvolanie akčného potenciálu. Na dosiahnutie prahu sa preto musia jednotlivé EPSP sčítať. Sumácia môže byť priestorová alebo časová a obdobne môže prebiehať aj pri inhibičných postsynaptických potenciáloch.
Priestorová sumácia
Pri priestorovej sumácii sa sčítavajú vzruchy prichádzajúce po viacerých aferentných vláknach. Nastáva vtedy, keď v rovnakom čase pôsobí na postsynaptickú membránu väčší počet synapsií.
Depolarizačné účinky viacerých synaptických vstupov sa sčítajú a približujú membránový potenciál k prahu. Priestorová sumácia sa uplatňuje aj pri facilitácii, keď môže excitačná synapsa umožniť priechod podnetu, ktorý je sám osebe podprahový.
Časová sumácia
Pri časovej sumácii sa sčítavajú vzruchy prichádzajúce v rýchlom časovom slede po jednom aferentnom vlákne. Membrána nemá čas vrátiť sa do pokojového stavu, a preto sa nový EPSP pripojí k predchádzajúcemu.
Časová sumácia nastáva vtedy, keď ten istý presynaptický neurón vysiela opakované stimuly tak rýchlo za sebou, že nové EPSP vznikajú ešte pred odznením predchádzajúcich EPSP. Tým sa potenciály postupne sčítavajú.
Facilitácia a oklúzia
Facilitácia
Facilitácia je zvýšenie excitability neurónu, ktoré uľahčuje následnú aktiváciu. Podprahový vzruch jedného neurónu facilituje vybavenie akčného potenciálu iným vzruchom.
Pri facilitácii neurón nedostane dostatok vstupov na okamžité vyvolanie akčného potenciálu, ale čiastočne sa depolarizuje. Ak k nemu v tomto stave dorazí ďalší, inak slabý stimul z iného zdroja, ľahšie dosiahne prah a spustí akčný potenciál.
Facilitácia sprevádza priestorovú sumáciu pri EPSP. Na synaptickej úrovni môže byť spôsobená prechodným tokom vápenatých iónov do presynaptických zakončení, ktorý zvyšuje pravdepodobnosť uvoľnenia neurotransmitera alebo množstvo neurotransmitera uvoľneného do synaptickej štrbiny.
Oklúzia
Oklúzia je prekrytie účinkov viacerých nervových vstupov. Ak dva nervy stimulujú spoločné cieľové neuróny naraz, celková odpoveď je menšia než súčet ich jednotlivých odpovedí.
Je to preto, lebo spoločné neuróny sa nemôžu aktivovať dvakrát, takže časť očakávaného účinku sa v prekrytí stratí. Oklúzia predstavuje princíp „všetko alebo nič“: dva silne nadprahové potenciály môžu viesť iba k jednému akčnému potenciálu.
Synaptická plasticita
Synaptická plasticita označuje schopnosť synapsií prechodne alebo dlhodobo meniť účinnosť synaptického prenosu. Nervový systém sa vďaka nej dokáže adaptovať a meniť efektivitu svojich prepojení.
Krátkodobá plasticita vedie k prechodne zvýšenému prenosu signálu, teda facilitácii, alebo k jeho prechodnému zníženiu, teda depresii. Dlhodobá plasticita je predpokladom vytvárania pamäťových stôp.
Krátkodobá synaptická plasticita
Pri krátkodobej synaptickej facilitácii dochádza k prechodnému vtoku vápenatých iónov do presynaptických terminálov. To zvyšuje pravdepodobnosť vylitia neurotransmitera alebo množstvo neurotransmitera uvoľneného pri ďalšom podnete.
To, či dôjde k facilitácii alebo depresii, závisí predovšetkým od molekulárnej výbavy konkrétnej synapsie. Výsledkom facilitácie je zvýšenie excitačného postsynaptického potenciálu.
Medzi mechanizmy synaptickej facilitácie patrí paired-pulse facilitácia po dvoch po sebe nasledujúcich stimuloch, ktorá prebieha rýchlejšie, v priebehu desiatok až stoviek milisekúnd, a posttetanická potenciácia po vysokofrekvenčnej stimulácii, ktorá je pomalšia a pretrváva v priebehu minút.
Synaptická depresia a únavnosť synapsií
Synaptická depresia môže vzniknúť vyčerpaním zásob neurotransmiterov, zmenou aktivity presynaptických vápnikových kanálov alebo desenzitizáciou postsynaptických receptorov.
Únavnosť znamená znižovanie dráždivosti synapsie v priebehu opakovanej stimulácie. Rýchlosť únavy závisí od funkčného stavu synapsie. Tento jav chráni systém pred preťažením a umožňuje dynamickú reguláciu aktivity.
Posttetanická potenciácia: definícia a časový priebeh
Posttetanická potenciácia vzniká po krátkej, približne sekundovej vysokofrekvenčnej aktivácii nervovej bunky. Po skončení tetanizujúcej stimulácie sa synaptická odpoveď zvýši a vyšší EPSP môže pretrvávať niekoľko minút až hodín.
PTP má pomalší nástup než facilitácia a jej doznievanie je podstatne pomalšie. Ide teda o prechodnú zmenu synaptickej účinnosti, ktorá je dlhšia než krátka paired-pulse facilitácia, ale odlišuje sa od dlhodobej potenciácie mechanizmom a časovým priebehom.
| Vlastnosť | Facilitácia | Posttetanická potenciácia | Dlhodobá potenciácia |
|---|---|---|---|
| Vyvolanie | Dva po sebe idúce stimuly alebo krátka opakovaná aktivita | Krátka, približne 1 s trvajúca vysokofrekvenčná aktivácia | Krátka vysokofrekvenčná stimulácia presynaptickej časti |
| Nástup | Rýchlejší, v ráde desiatok až stoviek milisekúnd | Pomalší, obvykle v priebehu sekúnd | Po indukcii synaptickými mechanizmami |
| Trvanie | Krátke | Niekoľko minút až hodín | Desiatky minút, hodiny alebo dni |
| Hlavný mechanizmus | Prechodný vtok Ca2+ do presynaptických terminálov | Zvýšenie vnútrobunkového Na+ a Ca2+ | Aktivácia postsynaptických receptorov a Ca2+-dependentných mechanizmov |
Mechanizmus posttetanickej potenciácie
Mechanizmus vzniku PTP nie je presne známy, ale významnú úlohu v ňom má zvýšenie vnútrobunkového Na+ a Ca2+. Pri tetanizujúcej stimulácii pravdepodobne dochádza k saturácii vnútrobunkových väzbových miest pre vychytávanie Ca2+.
Opakované akčné potenciály vedú k nahromadeniu vápenatých iónov v presynaptickom zakončení. Zvýšená dostupnosť Ca2+ následne zvyšuje pravdepodobnosť exocytózy synaptických vačkov a uvoľnenia neurotransmitera.
Ak sa na synaptickom spojení uvoľňuje glutamát, viaže sa na glutamátové receptory. Pri dostatočnej aktivácii môžu NMDA receptory umožniť vstup Na+ a Ca2+; vápnik po väzbe na kalmodulín aktivuje NO-syntázu, ktorá štiepi z arginínu NO, a ten môže spätne zvyšovať uvoľňovanie glutamátu.
Výsledkom týchto zmien je zvýšená účinnosť synaptického prenosu a väčšia postsynaptická odpoveď na rovnaké presynaptické podráždenie. PTP je preto podmienená predovšetkým synaptickými mechanizmami a zvýšenou dostupnosťou neurotransmitera v presynaptickom zakončení.
Excitačné a inhibičné postsynaptické potenciály
Postsynaptická excitácia
Excitačný mediátor, napríklad glutamát, otvára iónové kanály pre Na+ alebo Ca2+. Vtok kladných iónov vyvolá prechodnú lokálnu depolarizáciu, pri ktorej sa membránový potenciál posúva bližšie k prahu.
EPSP môže byť sám osebe podprahový. Pri priestorovej alebo časovej sumácii však môže spolu s ďalšími excitačnými potenciálmi dosiahnuť prah potrebný na vznik akčného potenciálu.
Postsynaptická inhibícia
Inhibičné mediátory vyvolávajú otvorenie chloridových a draslíkových kanálov. To vedie k hyperpolarizácii postsynaptickej membrány, pri ktorej sa membránový potenciál stáva zápornejším.
IPSP tým znižuje pravdepodobnosť vzniku akčného potenciálu. EPSP a IPSP pôsobia antagonisticky a ich priestorové i časové účinky sa na postsynaptickom neuróne integrujú.
Presynaptická a postsynaptická inhibícia
Presynaptická inhibícia
Pri presynaptickej inhibícii nasedá na presynaptický útvar synapsa s inhibičným alebo excitačným neurónom. Môže dôjsť k zníženiu potenciálu presynaptického útvaru alebo k jeho predčasnej excitácii, pri ktorej sa pôvodný potenciál neuplatní v plnom rozsahu.
V oboch prípadoch sa znižuje množstvo mediátora uvoľneného do synaptickej štrbiny. Neuróny vyvolávajúce presynaptickú inhibíciu končia na presynaptickej časti aferentných vlákien excitačných synapsií.
Čiastočná depolarizácia presynaptického zakončenia síce zvyšuje jeho dráždivosť, ale súčasne obmedzuje účinok pôvodného akčného potenciálu prichádzajúceho do zakončenia. Dôsledkom je menšie uvoľnenie mediátora a slabšie podráždenie postsynaptickej membrány.
Postsynaptická inhibícia prostredníctvom interneurónov
Kolaterálny aferentný inhibičný interneurón je inervovaný tým istým neurónom, ktorý excituje neurón inhibovaný prostredníctvom interneurónu. Kolaterálny eferentný inhibičný interneurón dostáva aferentáciu z neurónu, ktorý následne sám inhibuje.
Pri kolaterálnej eferentnej inhibícii nastáva inhibícia až po excitácii. Takéto usporiadanie umožňuje časovo i priestorovo presnej regulácii nervovej aktivity.
Vzťah PTP k dlhodobej potenciácii
Dlhodobá potenciácia, označovaná ako long-term potentiation alebo LTP, je dlhodobé zvýšenie synaptickej transmisie trvajúce desiatky minút, hodiny alebo dni. Vyvoláva ju krátka vysokofrekvenčná stimulácia presynaptickej časti.
LTP sa od posttetanickej potenciácie a dlhodobej facilitácie líši tým, že pri nej musia byť aktivované postsynaptické receptory. Predpokladá sa, že LTP je dôležitá v počiatočných fázach učenia a zapamätávania a študuje sa najmä v hipokampe.
Posttetanická potenciácia je teda kratšie trvajúca forma zvýšenia synaptickej účinnosti, ktorá môže vytvárať podmienky pre neskoršie dlhodobejšie zmeny. Dlhodobá potenciácia zahŕňa aj stabilnejšie zmeny receptorov, génovej expresie, proteosyntézy a morfológie synapsie.
NMDA receptory a vznik LTP
Za normálnych podmienok vedie uvoľnenie glutamátu do synaptickej štrbiny k otvoreniu iónových kanálov, ktoré sú súčasťou AMPA a kainátových receptorov. Cez tieto receptory prechádzajú najmä Na+ a K+, zatiaľ čo Ca2+ kanál NMDA receptora je v závislosti od napätia blokovaný Mg2+.
Počas vysokofrekvenčnej stimulácie dochádza k dostatočnej depolarizácii membrány, ktorá zruší blokádu NMDA receptora iónmi Mg2+. Následne môže Ca2+ vstupovať do postsynaptickej časti.
Vstup Ca2+ aktivuje procesy závislé od vápnika, ktoré vedú k zvýšenej dostupnosti postsynaptických AMPA a kainátových receptorov. Uplatňuje sa fosforylácia prostredníctvom Ca2+/kalmodulín-dependentnej kinázy typu II alebo proteínkinázy C a čiastočná proteolýza kalpaínom.
Zmeny v stave AMPA a kainátových receptorov vedú k zvýšenej odpovedi na uvoľnenie glutamátu do synaptickej štrbiny. Existujú dôkazy, že na zvýšenom synaptickom prenose sa čiastočne podieľa aj zvýšené uvoľňovanie glutamátu z presynaptických zakončení.
Presynaptické zakončenia môžu dostať spätný signál z postsynaptického neurónu. Ako možné spätné signály sa uvádzajú uvoľnenie arachidonátu alebo oxidu dusnatého (NO), ktoré môžu podporiť ďalšie uvoľňovanie glutamátu.
Raná a neskorá fáza dlhodobej potenciácie
Raná LTP
Raná forma LTP, označovaná ako E-LTP, má indukčnú a udržiavaciu fázu. Indukcia začína aktiváciou AMPA receptorov, ktorá mení membránový potenciál a umožňuje aktiváciu NMDA receptorov.
Vtok vápenatých iónov aktivuje kalmodulín-dependentné kinázy CaMKII, PKA a PKC. V udržiavacej fáze aktivované kinázy fosforylujú ďalšie kinázy a AMPA receptory a do synaptickej membrány sa inkorporujú ďalšie AMPA receptory.
Neskorá LTP
Neskorá forma LTP, označovaná ako L-LTP, začína aktiváciou cAMP, ktorý spúšťa kaskádu vedúcu k aktivácii MAPK/ERK a k expresii génov časnej odpovede, teda immediate early genes (IEG). Aktivácia MAPK/ERK pretrváva.
V udržiavacej fáze ERK aktivuje ďalšie transkripčné faktory a dochádza k proteosyntéze. Udržiavaciu fázu zásadne ovplyvňuje PKM-zeta.
Neskorá L-LTP je terminálnou fázou, počas ktorej sa aktivujú proteíny podieľajúce sa na génovej transkripcii, proteosyntéze a morfologických zmenách na synapse.
Dlhodobá synaptická depresia
V centrálnom nervovom systéme môže vzniknúť aj opačný jav k LTP, teda dlhodobá depresia, označovaná ako long-term depression alebo LTD. LTD je antagonistickým procesom k LTP.
Pri čiastočnej depolarizácii neurónu približne na prah otvorenia NMDA receptorov môže vtok vápnika aktivovať fosfatázy. Tie defosforylujú a inaktivujú iné kinázy, napríklad CaMKII, a AMPA receptory.
Proces vedie k potlačeniu génovej expresie. Významnú úlohu majú aj presynaptické mechanizmy sprostredkované metabotropnými glutamátovými a endokanabinoidnými receptormi.
PTP, učenie a pamäťová stopa
Hebbov zákon opisuje princíp, podľa ktorého opakovaná a pretrvávajúca aktivita spojenia medzi neurónmi vedie k rastovým procesom alebo metabolickým zmenám. Zjednodušene sa vyjadruje slovami: bunky, ktoré sa aktivujú spolu, sa aj navzájom funkčne prepájajú.
Postaktivačná alebo posttetanická potenciácia sa považuje za jeden z mechanizmov učenia. Opakovaná stimulácia vedie k zvýšeniu excitability a k účinnejšiemu prenosu na synaptickom spojení.
PTP a kindling patria medzi mechanizmy, ktoré môžu prispievať k formovaniu pamäťovej stopy. Pri adekvátnej stimulácii môže efekt pretrvávať dlho a pri opakovanej rytmickej stimulácii v pravidelných intervaloch môže dôjsť k výraznému zvýšeniu excitability.
Kindling predstavuje jav, pri ktorom opakovaná rytmická stimulácia vedie k výraznejšiemu a trvalejšiemu zvýšeniu excitability. Tieto zmeny pretrvávajú podstatne dlhšie než zmeny pri samotnej dlhodobej potenciácii.
Význam PTP v neurológii
Posttetanická potenciácia ukazuje, že synaptický prenos nie je nemenný. Predchádzajúca aktivita synapsie mení jej následnú odpoveď, takže rovnaký podnet môže po tetanizujúcej stimulácii vyvolať väčší EPSP a účinnejšie aktivovať postsynaptický neurón.
Takáto plasticita je dôležitá pre pochopenie toho, ako nervový systém spracováva informácie, ako vznikajú krátkodobé zmeny v účinnosti synapsií a ako sa môžu vytvárať stabilnejšie zmeny spojené s učením a pamäťou.
V neurológii je potrebné vnímať PTP v súvislosti s rovnováhou medzi excitáciou a inhibíciou. Nadmerná excitabilita môže meniť funkciu nervových okruhov, zatiaľ čo presynaptická a postsynaptická inhibícia obmedzujú šírenie nadmernej aktivity a zvyšujú presnosť synaptického prenosu.
Štúdium synaptickej plasticity
Synaptickú plasticitu možno skúmať metódami in vitro aj in vivo. Používajú sa elektrofyziologické metódy, nahrávanie voľne sa pohybujúcich zvierat a viacnásobné záznamy aktivity jednotlivých neurónov.
Pri štúdiu hipokampu sa využívajú place cells, tetrody a klastrovanie, teda triedenie multijednotkového záznamu na jednotlivé neuróny. Firing rate maps umožňujú sledovať, ako aktivita neurónov súvisí s polohou zvieraťa a orientačnými značkami.
Pri fenoméne remappingu sa mení aktivita neurónov podľa prostredia. Neuróny nemusia mapovať iba aktuálne miesto, ale aj skúsenosť zvieraťa, pričom pri zmene prostredia sa môže ich aktivita zmeniť.
Entorhinálne grid cells vytvárajú hexagonálnu sieť buniek. Mierka sa mení podľa toho, kde sa neurón nachádza: dorzálne neuróny majú veľmi drobnú mierku a ventrálne neuróny hrubšiu. Tieto bunky sú aktívne v rôznych prostrediach.
Intervenčné metódy pri výskume nervových okruhov
Na skúmanie funkcie nervových okruhov sa používajú permanentné lézie, napríklad aspiračné, chirurgické, termokoagulačné, excitotoxické a selektívne neurotoxické lézie.
Dočasné funkčné lézie možno vytvoriť pomocou implantovaných kanýl na intrakraniálne injekcie, tetrodotoxínu, iných blokátorov iónových kanálov, AMPA antagonistu CNQX alebo agonistov inhibičnej neurotransmisie.
Lokálne možno aplikovať aj agonisty a antagonisty špecifických receptorov. Genetické manipulácie zahŕňajú knock-out, knock-down a knock-in, systém Cre rekombinázy, bunkovo špecifické promótory a indukovateľný systém Tet-O.
Zobrazovanie aktivity neurónov a génov
Nervová aktivita spúšťa expresiu génov časnej odpovede, teda immediate early genes. Ich aktivitu možno skúmať pomocou RNA in situ hybridizácie, rádioaktívnej hybridizácie, FISH, qPCR a metód založených na analýze proteínov.
Pri analýze proteínov sa využíva imunohistochémia a western blot. Tieto metódy umožňujú sledovať molekulárne zmeny, ktoré sprevádzajú aktiváciu neurónov a dlhodobejšiu zmenu synaptickej účinnosti.
Optogenetika využíva katiónový kanál, chloridovú pumpu alebo svetločivný chimérický GPCR. Možno kombinovať rôzne vlnové dĺžky, vírusové vektory a ďalšie transgény, napríklad Cre rekombinázu alebo tetracyklínový transaktivátor.
Metóda Clarity využíva vzorky odtučneného tkaniva fixovaného v polyméri. Odtučnenie umožňuje prestup svetla, aktiváciu optogenetických štruktúr a in situ hybridizáciu, pričom experimenty možno opakovane vykonávať.
Od PTP k pamäťovej stope
Krátkodobé zmeny synaptickej účinnosti, ako facilitácia a PTP, môžu meniť odpoveď nervového okruhu bez okamžitej potreby stabilnej prestavby synapsie. Dlhodobá potenciácia však zahŕňa aj zmeny receptorov, génovej expresie, proteosyntézy a morfológie synaptického spojenia.
Práve prechod od rýchlej presynaptickej zmeny k dlhodobejšej postsynaptickej a molekulárnej prestavbe umožňuje chápať rozdiel medzi posttetanickou potenciáciou a LTP. PTP je predovšetkým prechodné zvýšenie uvoľňovania mediátora po intenzívnej aktivácii, zatiaľ čo LTP predstavuje stabilnejšiu zmenu účinnosti synaptického prenosu.
tags: #posttetanicka #potenciacia #neurologia