Nervový vzruch, označovaný také jako akční potenciál, vzniká změnou klidové rovnováhy na membráně nervové buňky. Nervové buňky jsou excitabilní a vodivé, takže dokážou transformovat podnět v nervový vzruch a dále jej převádět.
Ke vzniku vzruchu dochází v místě, kde převažují napěťově řízené iontové kanály. Akční potenciál funguje na principu „všechno nebo nic“: pokud je překročen práh pro excitaci neuronu, dojde ke vzniku akčního potenciálu vždy ve stejné kvalitě.
Základ vzniku nervového vzruchu
Významnou roli při vzniku akčního potenciálu hraje plasmatická membrána nervové buňky. Plasmatická membrána je tvořená dvojvrstevnou lipidovou vrstvou a je takzvaně semipermeabilní - prostupná jen pro některé molekuly.
Ionty musí být transportovány pomocí proteinové pumpy nebo proteinových kanálů, které ovlivňují intracelulární a extracelulární koncentraci iontů. Na udržování membránového potenciálu se podílejí ionty (K+, Na+, Cl-, Ca2+ a ionty bílkovin). Nejvýznamnější roli hraje koncentrace iontů draslíku a sodíku.
Zatímco intracelulárně je vyšší koncentrace iontů K+, extracelulárně je více Na+. Klidový potenciál má hodnotu přibližně -70 mV. Náboj má negativní hodnotu, protože na vnitřní straně plasmatické membrány je negativní náboj, zatímco vně membrány je pozitivní náboj, zejména díky většímu množství kationtů sodíku.
| Stav nervové buňky | Charakteristika |
|---|---|
| Klidový membránový potenciál | Klidový potenciál má hodnotu přibližně -70 mV. |
| Intracelulární prostředí | Vyšší koncentrace iontů K+. |
| Extracelulární prostředí | Vyšší koncentrace iontů Na+. |
Pokud nedochází k podráždění neuronu, je na membráně udržován klidový membránový potenciál, který je vytvářen rozdílným elektrickým nábojem na obou stranách plasmatické membrány. V klidovém stavu je plasmatická membrána neuronu prakticky neprostupná pro Na+.
Rovnováha je udržována pomocí sodnodraselné pumpy, která aktivně transportuje ionty sodíku ven z buňky a ionty draslíku dovnitř. Dosažení původních hodnot klidového membránového potenciálu je podmíněno činností Na+/K+ATP-ázy, která přečerpává ionty proti jejich koncentračnímu gradientu.
Prahový podnět a princip „vše nebo nic“
Napěťově řízené iontové kanály se řídí zákonem vše nebo nic. To znamená, že vzruch vznikne pouze dostatečně intenzivním podnětem, který nazýváme jako prahový podnět.
Různé neurony mohou mít různý práh pro depolarizaci, ale u jednoho neuronu bývá intenzita prahového podnětu konstantní. Při prahové hodnotě dochází k otevření Na+ napěťově řízených iontových kanálů.
Pokud dojde ke stimulaci neuronu, otevřou se takzvané „napěťově řízené kanály“ pro sodné ionty, které se dostávají dovnitř buňky. Sodné kationty pak prostupují do intracelulárního prostoru dle koncentračního i elektrického gradientu.
Fáze akčního potenciálu
Depolarizace
Vnitřní strana membrány se stává pozitivnější oproti straně vnější. Tento jev pak nazýváme depolarizace. Tato fáze se nazývá depolarizace a hodnota membránového potenciálu vzroste až k hodnotě +30 mV.
V případě, když je vnější strana membrány elektronegativnější, než strana vnitřní, mluvíme o transpolarizaci. Společně s Na+ kanály se pomalu otevírají i opožděné K+ kanály.
Repolarizace
Postupně se uzavírají napěťově řízené kanály pro sodík a otevřou se napěťově řízené kanály pro draslík, který se dostává ven z buňky, tím se obnoví původní hodnota membránového potenciálu.
Otevření těchto kanálů dosahuje svého maxima při uzavření Na+ kanálů. V důsledku proudění draselných iontů po směru jeho koncentračního gradientu se polarita začíná vracet k původním hodnotám a mluvíme o repolarizaci.
Pomocí sodnodraselné pumpy se ionty K+ dostávají zpět do buňky a ionty Na+ ven, dochází tedy k návratu do původního stavu. Tato fáze se nazývá repolarizace.
Hyperpolarizace
V případě, že dojde k prohloubení původního membránového potenciálu, hovoříme o hyperpolarizaci. Při hypokalémii (<3,7 mmol/l) dojde k hyperpolarizaci, prodloužení AP, není pro neuron snadné dosáhnout prahové hodnoty napětí.
Refrakterní fáze
Refrakterní fáze je stav, kdy není možné podráždit nervovou buňku tak, aby došlo ke vzniku akčního potenciálu. Refrakterní fáze může být relativní, což je stav, kdy jsme schopni nadprahovým podnětem vytvořit akční potenciál.
Dále můžeme hovořit o absolutní refrakterní fázi, při které nelze žádným podnětem vyvolat vzruch. V době, kdy proudí ionty sodíku do buňky, je buňka zcela necitlivá k další stimulaci, toto období se nazývá absolutní refrakterní fáze.
V průběhu repolarizace je buňka téměř necitlivá, nicméně může dojít k excitaci při velmi silném podnětu. Toto období se nazývá relativní refrakterní fáze.
| Refrakterní období | Možnost vyvolat akční potenciál |
|---|---|
| Absolutní refrakterní fáze | Při které nelze žádným podnětem vyvolat vzruch. |
| Relativní refrakterní fáze | Jsme schopni nadprahovým podnětem vytvořit akční potenciál. |
Šíření nervového vzruchu po nervovém vlákně
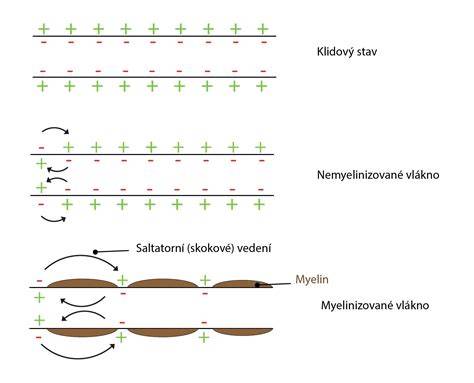
Akční potenciál se šíří po celé délce nervového vlákna, změny napětí aktivují sousední úseky, na kterých také dochází k depolarizaci. Akční potenciál se šíří bez dekrementu, jinak řečeno neztrácí na intenzitě.
To je způsobeno vznikem lokálních proudů. Lokální proudy vznikají nad místem, kde došlo ke změně rozložení iontů. Důsledkem vzniku těchto proudů je depolarizace membrány sousedního úseku vlákna.
Lokální proudy urychlují vedení vzruchu. Šíření vzruchu na nemyelinizovaném vlákně je relativně pomalé.
Vedení na nemyelinizovaném vlákně
Akční potenciál se šíří postupně po celé délce membrány nervového vlákna. Změna napětí v jednom úseku aktivuje sousední úsek, kde následně dochází k depolarizaci.
Saltatorní vedení na myelinizovaném vlákně
K rychlejšímu šíření dochází u neuronů, jejichž axony jsou obaleny myelinovou pochvou. Myelinová pochva brání depolarizaci tím, že neumožňuje transport sodíkových iontů přes plasmatickou membránu.
V případě, že jsou úseky prodlouženy, například izolací myelinovou pochvou, dochází k působení lokálních proudů až v dalším neizolovaném úseku a tím je umožněn mnohem rychlejší přenos vzruchu, než u nemyelinizovaných vláken.
Nervový vzruch se šíří pouze v místech, kde je přerušena myelinová pochva. Tato místa se nazývají Ranvierovy zářezy a vzruch se zde šíří saltatorním (skokovým) způsobem. Proto se vzruch myelinizovanými vlákny šíří rychleji.
Myelinová pochva a Ranvierovy zářezy
Myelinová pochva je izolační vrstva, která obklopuje axony některých neuronů, a jejíž hlavní součástí je myelin. Jednotlivé úseky myelinové pochvy jsou od sebe vzájemně odděleny Ranvierovými zářezy.
Každý úsek myelinové pochvy je tvořen specializovanými buňkami, takzvanými Schwannovými buňkami, které jsou silně oploštělé a kolem axonu jsou navinuty až 50×.
Myelinová pochva vzniká již v prenatálním období, tzn. ještě v děloze matky. Takto vznikající rulička je zpočátku volná, ale její vnitřní vrstvy jsou postupně čím dál tenčí.
Jádro a většina cytoplazmy Schwannovy buňky se nakonec ocitne na vnějším povrchu myelinové pochvy. Tato vrstva je označována jako neurilema.
Rychlost šíření nervového vzruchu
Rychlost šíření nervového vzruchu je rychlost vzruchu, tedy přenesení informace mezi nervy. Záleží na druhu nervových vláken.
Pokusy bylo zjištěno, že rychlost šíření vzruchů je větší u vláken s tlustší myelinovou pochvou než u vláken s pochvou tenoučkou. Myelinová pochva, z hmoty zvané myelin, je obal axonu, tedy nervového výběžku.
| Charakteristika | Rychlost šíření nervového vzruchu |
|---|---|
| Typická hodnota | 75 m·s-1 |
| Minimální hodnota | 0,5 m·s-1 |
| Maximální hodnota | 120 m·s-1 |
| Vlákna s tlustší myelinovou pochvou | 50 až 100 m·s-1 |
| Vlákna s tenkou myelinovou pochvou | 0,5 až 2 m·s-1 |
| Alfa vlákna | až 120 m·s-1 |
Uvedená hodnota odpovídá průměrné rychlosti šíření vzruchů u nervových vláken s tlustší myelinovou pochvou, je udávána 50 až 100 m·s-1. Uvedená minimální hodnota odpovídá rychlosti šíření vzruchů u nervových vláken s tenkou myelinovou pochvou, je udávána 0,5 až 2 m·s-1.
Uvedená maximální hodnota odpovídá rychlosti šíření vzruchů u tzv. Alfa vláken, která vedou vzruch rychlostí až 120 m·s-1 a jsou určena k inervaci příčně pruhovaného svalstva.
Akční potenciál v různých tkáních
Akční potenciál zde popsaný platí všeobecně pro všechny buňky schopné vytvořit vzruch. Tento obecný model se popisuje na nervové buňce.
U různých buněk se akční potenciál liší například hodnotou prahového podnětu, délkou trvání, iontovými kanály, které ho udržují, průběhem křivky AP a dalšími vlastnostmi.
Vliv koncentrace draslíku
Kalémie = vyšší hodnoty ECT draslíku membránu mírně depolarizují, neboť se omezuje koncentrační gradient pro K+, takže není možná úplná repolarizace po depolarizaci.
Při této hyperkalémii se nejprve dráždivost zvyšuje, poté dochází k bloku napěťově řízených kanálů a dráždivost se snižuje (>5,3 mmol/l) - zkrácení AP. Napětí dosáhne snadněji prahové hodnoty.
Buňka není excitabilní. To je principem šířící se kaliové deprese. Naopak při hypokalémii (<3,7 mmol/l) dojde k hyperpolarizaci, prodloužení AP, není pro neuron snadné dosáhnout prahové hodnoty napětí.
| Stav | Vliv na membránový potenciál a vzruch |
|---|---|
| Hyperkalémie | Membránu mírně depolarizuje; nejprve se dráždivost zvyšuje, poté dochází k bloku napěťově řízených kanálů a dráždivost se snižuje (>5,3 mmol/l). |
| Hypokalémie | Došlo k hyperpolarizaci, prodloužení AP, není pro neuron snadné dosáhnout prahové hodnoty napětí. |
Neuron jako základní jednotka nervového systému
Neurony jsou vysoce specializované buňky nervové tkáně, jejichž dlouhé výběžky umožňují v těle přenášet nervové impulzy na velkou vzdálenost. Většina neuronů má charakteristický tvar: kromě buněčného těla se vyznačují typickými výběžky, které jsou podle tvaru i funkce rozlišovány na dendrity a axon.
Na typickém neuronu rozlišujeme tři základní části: buněčné tělo - obsahuje jádro a probíhá zde tvorba proteinů, dendrity - krátké a bohatě větvené výběžky, jejichž prostřednictvím neuron přijímá nervové impulzy od jiných neuronů, axon neboli nervové vlákno - výběžek neuronu, který může mít velmi proměnlivou délku a jeho funkcí je odvádění nervových vzruchů směrem z těla neuronu k jiným neuronům, popř. k jiným typům buněk prostřednictvím synapsí.
Na rozdíl od dendritů je axon vždy pouze jeden. U některých neuronů jsou axony poměrně krátké, u jiných mohou být naopak velmi dlouhé.
Například v případě motorických neuronů, které ovládají pohyb svalů na chodidlech, vedou axony z oblasti bederní páteře až k chodidlu, tzn. jejich délka může přesahovat i jeden metr.
Typy neuronů
Rozdělení podle stavby
- Multipolární neurony - mají jeden axon a mnoho dendritů; tento typ tvoří převážnou většinu neuronů v centrálním nervovém systému.
- Bipolární neurony - mají jeden axon a jeden dendrit; tyto specializované neurony se vyskytují v některých smyslových orgánech, například ve vnitřním uchu, čichové oblasti nosní sliznice a sítnici v oku, a fungují tam jako senzorické neurony.
- Unipolární neurony - mají pouze jediný výběžek, takzvaný neurit; tento typ neuronu se však vyskytuje pouze u bezobratlých živočichů, včetně hmyzu, nikoli u člověka.
- Pseudounipolární neurony - rovněž mají jen jeden výběžek, velmi krátký, který se dělí přibližně ve tvaru písmene T na dvě dlouhé větve: centrální výběžek vybíhá směrem do centrálního nervového systému a periferní výběžek vybíhá směrem ke smyslovým receptorům.
Typickými pseudounipolárními neurony jsou senzorické neurony.
Rozdělení podle funkce
- Senzorické neurony - přenášejí nervové impulzy ze smyslových receptorů do centrálního nervového systému.
- Interneurony - prostřednictvím synapsí jsou propojeny pouze s jinými neurony a podílejí se na zpracování informací v centrálním nervovém systému.
- Motorické neurony - přenášejí nervové impulzy z mozkové kůry, z mozkového kmene nebo z míchy nejen do kosterních svalů, ale i do hladkých svalů a žláz.
Když se například člověk konečky prstů dotkne pichlavého předmětu, aktivují se senzorické neurony v konečcích prstů a vysílají tuto informaci do mozku. Interneurony jsou multipolární neurony, které jsou prostřednictvím synapsí vzájemně propojeny do spletitých sítí.
Přenos vzruchu mezi buňkami
Z terminálního zakončení axonu musí být nervový vzruch převeden na dendrit dalšího neuronu nebo na další buňku, například svalovou buňku. Toto spojení se nazývá synapse.
Synapse je specializovaný funkční kontakt mezi membránami dvou buněk, z nichž alespoň jedna je neuron. Funkcí synapse je přenos nervového vzruchu.
V terminálním zakončení axonu se nachází synaptické váčky s neurotransmiterem a mitochondrie, které slouží k tvorbě energie. Plasmatická membrána axonu v oblasti synapse se nazývá presynaptická membrána, plasmatická membrána dendritu se nazývá postsynaptická membrána.
Mezi nimi se nachází synaptická štěrbina. Neurotransmiter poté stimuluje dendrit a tím je zabezpečeno další vedení nervového vzruchu.
Typy synapsí podle zúčastněných částí
- Interneuronální synapse: axo-dendritické, axo-somatické, dendro-dendritické, axo-axonální a somato-dendritické.
- Neuroefektorové synapse, například nervosvalová ploténka, tedy kontakt mezi axonem a svalovým vláknem.
- Neuroreceptorové synapse mezi neuronem a receptorem.
Typy synapsí podle způsobu přenosu
- Chemické synapse.
- Elektrické synapse.
- Smíšené synapse.
Synapse u člověka jsou nejčastěji synapse chemické, na kterých je signál přenášen prostřednictvím mediátoru, tedy neurotransmiteru. Elektrické synapse jsou spíše vzácné, vyskytují se například v olivárních jádrech. Smíšené synapse nacházíme u nižších živočichů, jako jsou ryby.
Elektrická synapse
Elektrická synapse umožňuje přímý tok elektrického proudu, a proto se jedná o velmi rychlý, nejrychlejší, typ spojení. Je tvořena konexony, složenými ze šesti proteinů - konexinů, které společně vytváří spojení typu gap junction.
Průtok otevřeným spojem je možný většinou obousměrně, u usměrněných synapsí pak probíhá napěťová regulace a dochází pouze k jednosměrnému vedení. Tento typ synapse je obvykle excitační.
Vzruch se přenese na postsynaptickou membránu pouze s mírným zmenšením amplitudy, protože jsou buňky propojeny úzkými konexony, což umožňuje průtok iontů, aniž by se otevíraly iontové kanály.
Chemická synapse
Chemické synapse jsou pomalým spojením, při procesu uvolňování mediátorů dochází ke zdržení minimálně o 0,5 ms. Jsou zpravidla jednosměrné a mohou být jak excitační, tak inhibiční, podle typu uvolňovaného mediátoru.
Synapsi tvoří presynaptický útvar a postsynaptický útvar, mezi nimiž je synaptická štěrbina. Šířka štěrbiny je obvykle 20−30 nm, inhibiční synapse okolo 10 nm.
Presynaptický útvar je buď zakončením axonu, takzvaný terminální buton, nebo se jedná o vyklenutí axoplasmy axonu v jeho průběhu, synapse en passant.
Presynaptická část je vakovité rozšíření axonu, které obsahuje synaptické váčky, vezikuly, a velké množství mitochondrií, které produkují ATP nutné při procesu uvolňování neurotransmiteru.
Synaptické váčky obsahují molekuly mediátoru a hromadí se u synaptické štěrbiny v takzvané aktivní zóně synapse. Membrána postsynaptického útvaru obsahuje receptory pro mediátor.
Mechanismus přenosu vzruchu v chemické synapsi
- Vzruch šířící se po axonu dosáhne presynaptického útvaru, čímž dochází k jeho depolarizaci.
- Depolarizace způsobí otevření napěťově řízených Ca2+ kanálů v presynaptické membráně a influx Ca2+ do buňky.
- Vápenaté ionty uvolňují vazbu mezi proteiny cytoskeletu buňky a synaptickými váčky.
- Váčky jsou pomocí transportních proteinů ve své membráně přesunovány do aktivní zóny.
- V aktivní zóně dochází ke splynutí transportních proteinů s proteiny na membráně neuronu a vzniká takzvaný SNARE komplex.
- Obsah váčků je exocytózou uvolněn do synaptické štěrbiny.
- Probíhá vazba mediátoru na receptor postsynaptické membrány, čímž se v ní otevírají iontové kanály a dochází ke vzniku postsynaptických potenciálů.
Vápenaté ionty uvolňují vazbu mezi proteiny cytoskeletu buňky a synaptickými váčky. Mediátor se uvolňuje v kvantech.
Neurotransmitery a receptory
Nejběžnějším neurotransmiterem je acetylcholin, dále adrenalin, serotonin a dopamin. Interakce mezi receptorem a iontovým kanálem může být různá.
Iontové kanály v postsynaptické membráně, které se otevřou po vazbě mediátoru na receptor, patří mezi chemicky řízené iontové kanály, například nikotinový acetylcholinový receptor. Receptor je bezprostřední součástí molekuly kanálu.
Jiný způsob přenosu je spřažení receptoru s G-proteiny. Aktivuje se signalizační kaskáda přes adenylátcyklázu, druhého posla, cAMP, a proteinkinázu, která fosforylací docílí otevření iontového kanálu.
Cholinergní synapse
Cholinergní synapse byla popsána jako první. Nikotinové receptory jsou součástí iontového kanálu a způsobují influx Na+; nebo může jít o muskarinové receptory, které jsou spřaženy s G-proteiny a jsou metabotropní.
Acetylcholin je rozkládán acetylcholinesterázou. Následně je cholin zpětně vychytáván cholinovým transportérem a cholinacetyltransferázou syntetizován znovu do podoby acetylcholinu, který je transportován do vezikul.
Adrenergní synapse
Ligandem adrenergních synapsí jsou katecholaminy, zejména adrenalin a noradrenalin. Rozlišujeme tyto typy adrenergních receptorů: α1-adrenergní receptory, α2-adrenergní receptory, β1-adrenergní receptory, β2-adrenergní receptory a β3-adrenergní receptory.
Terapeutický význam má však jen dělení na α1, α2, β1 a β2 receptory. Všechny z nich jsou spřaženy G-proteiny.
Takové synapse nalezneme například v neuroefektorových synapsích sympatiku, kde se stýká axon postgangliového neuronu s efektorovou buňkou. S výjimkou potních žláz zde neuron používá jako neurotransmiter noradrenalin, v potních žlázách acetylcholin.
Noradrenalin je uvolňován z vezikul do synaptické štěrbiny a váže se na receptory jak na efektorové buňce, tak na α2 receptory na neuronu, čímž zabraňuje dalšímu uvolňování noradrenalinu, tedy působí jako zpětnovazebná inhibice.
Odstranění mediátoru ze synaptické štěrbiny
Po interakci mediátoru a receptoru musí být mediátor ze synaptické štěrbiny specifickým mechanismem odstraněn.
- Přímý rozklad - v synaptické štěrbině se nachází enzymy rozkládající mediátor, například acetylcholinesteráza.
- Zpětné vychytávání - mediátor je vychytáván zpět do presynaptického zakončení a vrací se do synaptických vezikul k opětovnému použití.
Postsynaptické potenciály
Postsynaptické potenciály závisí na druhu mediátoru a synapse. V organismu vznikají dva hlavní typy potenciálů: excitační postsynaptický potenciál a inhibiční postsynaptický potenciál.
Excitační postsynaptický potenciál
Excitační postsynaptický potenciál (EPSP) je způsoben excitačními mediátory. V postsynaptické membráně se otevírají Na+ (Ca2+) kanály a dochází ke vstupu iontů do buňky, což způsobí depolarizaci.
Jeden EPSP představuje depolarizační změnu, která je hluboce podprahová (2−4 mV). EPSP se ale sčítají, tedy probíhá časová a prostorová sumace, takže může být dosaženo prahové úrovně (7,5-15 mV), při které v eferentní části synapse vzniká akční potenciál.
Inhibiční postsynaptický potenciál
Inhibiční postsynaptický potenciál (IPSP) je způsoben inhibičními mediátory. Dochází k otevření K+ a Cl- kanálů a proudu kladných iontů ven z buňky a záporných do buňky.
Membrána je pohyby iontů hyperpolarizována a snižuje se excitabilita neuronu. Hodnota IPSP je v rozmezí 2-5 mV.
Kombinací EPSP a IPSP na stejné membráně dochází k součtu signálů. Pokud inhibiční signál dostatečně sníží excitační, nedochází ke vzniku akčního potenciálu.
Pomalé postsynaptické potenciály
Pomalé postsynaptické potenciály spočívají pouze v regulaci K+ kanálů. Při zvýšení propustnosti kanálů dochází k IPSP, při snížení vzniká EPSP.
Tyto potenciály mají dlouhou latenci (100-500 ms) a trvání (sekundy-minuty).
Regulace přenosu nervového vzruchu
Presynaptická inhibice může probíhat dvěma způsoby. Prvním z nich je axo-axonální inhibice, při níž působí axon inhibičního neuronu na neuron presynaptický.
Autoinhibice spočívá ve vazbě mediátoru na receptory vlastní presynaptické membrány, ze které je vyplavován. Dochází k útlumu dalšího uvolňování neurotransmiteru, což zabraňuje nadměrné stimulaci postsynaptické membrány.
Postsynaptická inhibice je taktéž možná pomocí inhibičního neuronu, který zde ovšem působí na neuron postsynaptický. Autoinhibice může probíhat aferentně kolatelárně - kolaterála z presynaptického neuronu aktivuje inhibiční interneuron, který inhibuje postsynaptický neuron.
Eferentní kolaterální spoje vedou z postsynaptického neuronu přes inhibiční interneuron zpět na postsynaptický. Presynaptická facilitace a sumace vzniká zejména když dva neurony konvergují na jeden.
Podprahové podněty pak mohou vyvolat EPSP a následná sumace těchto signálů vyvolá akční potenciál. Nadprahové podněty vyvolají zpravidla prodloužený akční potenciál.
Okluze je zvláštním typem sumace, při níž dva nadprahové podněty vyvolají běžný akční potenciál, nikoli například prodloužený, jako je tomu u presynaptické facilitace a sumace.
Význam intenzity podnětu
Akční potenciál vznikne pouze po dosažení prahové hodnoty a jeho amplituda se u daného neuronu nemění podle síly podnětu. Výsledný efekt reakce nervového systému je ovlivněn počtem nervových impulsů, počtem reagujících neuronů a typem stimulovaného neuronu.
- Slabý podnět má za následek menší počet vzruchů než silný podnět.
- Silný podnět aktivuje současně více neuronů než slabý podnět.
- Některé neurony mají excitační a některé inhibiční účinek.
Vztah akčního potenciálu k reflexní reakci
Reflex je rychlá, stabilní, vůlí neovladatelná reakce na podnět. Funkcí reflexů je ochrana těla před nebezpečnými podněty, jako například horký nebo ostrý předmět.
Podkladem všech reflexů je takzvaný reflexní oblouk. Reflexní oblouk začíná receptorem, který zaznamená změnu ve vnitřním nebo vnějším prostředí těla.
Ze senzoru vede aferentní vlákno směrem k šedé hmotě míchy nebo do oblasti mozkového kmene. V šedé hmotě centrálního nervového systému je senzorický impulz přepojen pomocí několika interneuronů za účelem propojení impulzu s informacemi z dalších senzorů.
Z CNS vystupuje motoneuron, který vede informaci směrem k efektoru, tedy svalovému vláknu nebo žláze. U takzvaných monosynaptických reflexů se nevyskytují interneurony a reflexní oblouk je tvořen pouze dvěma neurony - senzorickým a motorickým.
Příkladem může být patelární reflex, při kterém při poklepání na čéškový vaz dojde k natažení svalů bérce. Příkladem polysynaptického reflexu s vmezeřenými interneurony je například flexorový reflex, při kterém při sáhnutí na ostrý předmět dochází ke flexi končetiny.
Akční potenciál v autonomním nervovém systému
Autonomní nervový systém je část nervového systému zodpovědná za řízení činnosti srdeční a hladké svaloviny a žláz, tedy činnosti neovladatelné vůlí. Úzce komunikuje s endokrinním systémem.
U autonomního nervového systému lze rozlišit sympatickou a parasympatickou část, které se liší umístěním jader v CNS, strukturou i účinkem na cílové orgány.
Eferentní vlákna sympatiku i parasympatiku jsou složena ze dvou neuronů, mezi kterými se nachází ganglion. První neuron, vycházející z centrálního nervového systému, se nazývá pregangliový, neuron, který vychází z ganglia, se nazývá postgangliový.
| Vlastnost | Sympatikus | Parasympatikus |
|---|---|---|
| Jádra | Hrudní a bederní mícha | Mozkový kmen a křížová mícha |
| Pregangliová vlákna | Krátká | Dlouhá |
| Postgangliová vlákna | Dlouhá | Krátká |
| Neurotransmiter na první synapsi | Acetylcholin | Acetylcholin |
| Neurotransmiter na druhé synapsi | Noradrenalin | Acetylcholin |
| Obecný efekt | Aktivace organismu k boji nebo útěku | Zklidnění organismu |
Zatímco sympatický systém autonomní inervace se uplatňuje spíše v situacích, kdy je potřeba organismus aktivovat k výkonu, parasympatický systém převládá v době klidu a odpočinku.
Na první synapsi mezi pregangliovým a postgangliovým vláknem dochází k přenosu vzruchu pomocí acetylcholinu u obou systémů, ale v oblasti cílového orgánu se sympatiku uplatňuje noradrenalin, zatímco u parasympatiku acetylcholin.
Proto se sympatický systém také nazývá adrenergní, parasympatický cholinergní. Zatímco sympatikus zvyšuje tepovou frekvenci, parasympatikus ji snižuje.
Sympatikus tlumí sekreci žaludečních žláz, zatímco parasympatikus ji stimuluje. Sympatikus také rozšiřuje průdušinky a zorničky, zatímco parasympatikus průdušinky i zorničky zužuje.
Hematoencefalická bariéra
Hematoencefalická bariéra je funkční bariéra mezi kapilárami nervové tkáně a vlastní nervovou tkání. Účelem je chránit nervový systém před potenciálně nebezpečnými látkami.
Endoteliální buňky, které tvoří stěnu mozkových kapilár, na sebe těsně naléhají, kapiláry jsou navíc obaleny vrstvou neurogliových buněk. Tím je zabezpečeno, že některé látky, například léčiva, močovina a proteiny, neprostupují do CNS.
Naopak jiné látky, například ionty sodíku, draslíku, glukóza a kyslík, prostupují snadno.